
La raó de ser de les neurones. Distància i velocitat
-

-

- 1 of 1

Cada ment humana és única. És la principal expressió de l’activitat funcional del sistema nerviós en cada individu. Per la ment hi discorren la memòria emmagatzemada de situacions passades, sensacions presents d’origen extern i intern, la consciència, les emocions i el pensament. El pensament humà és un corrent d’intel·ligència que amb la veu i la paraula flueix amb intensitat, líquid, i amb l’escriptura i l’art cristal·litza abans, potser, de dissoldre’s de nou en altres ments.
Com s’ha arribat, en l’evolució de la matèria i de la vida, a desenvolupar aquesta gran capacitat de la ment humana que és el pensament racional? Com la matèria mineral ha evolucionat fins a fer-se conscient d’ella mateixa? El coneixement sobre aquestes qüestions avança des de diferents camps i reflexionar sobre la raó de ser de les protagonistes, les neurones, és rellevant i estimulant.
Hi ha un increment progressiu de complexitat de la matèria en passar de molècules en dissolució a cèl·lules individuals, i d’aquestes a organismes pluricel·lulars amb teixits i òrgans especialitzats. En entorns físics permissius la tendència a la complexitat pot ser constitutiva. Acompanyant aquesta complexitat creixent, també s’han sofisticat necessàriament els mecanismes de coordinació de les parts, que es fonamenten en la comunicació intercel·lular. És en aquest punt, quan la comunicació intercel·lular va evolucionant i millorant, que algunes mutacions acaben produint cèl·lules monstruoses amb llargues prolongacions estables, les neurones, la qual cosa fa possible optimitzar la comunicació a distància en els organismes i salvar algunes febleses de l’altre mecanisme de comunicació, del sistema vascular circulatori, especialment la relativa lentitud en comunicar senyals d’aquest darrer.
Així, la primera finalitat de les neurones és comunicar a distància senyals directament, i, a més a més, la seva elevada diferenciació morfofuncional permet, com a valor afegit, que la comunicació es faci de forma ràpida, precisa, eficaç i plàstica. Aquestes característiques estructurals i funcionals tenen en el teixit nerviós més completesa que en la comunicació vascular, endocrina. Tots els components del teixit nerviós, des de les neurones individuals fins als circuits i els òrgans, reben senyals, els integren per crear el seu propi senyal i el condueixen i el transmeten de forma adaptable i plàstica a les seves cèl·lules diana, que poden estar molt allunyades.
La importància de comunicar senyals a distància
És plausible que en el començament de l’evolució dels organismes pluricel·lulars, encara amb poca diferenciació cel·lular i de teixits, alguna o algunes mutacions, potser en les molècules del citoesquelet, permetessin produir prolongacions cel·lulars allargassades similars a les de les neurones actuals. La diferenciació morfològica i histològica per recórrer distàncies pot estar en l’origen del sistema nerviós, juntament amb la sofisticació dels canals iònics.
Però de quines distàncies estem parlant? Les dimensions microscòpiques no són immediatament evidents en la nostra escala del dia a dia i costen d’imaginar. Podem fer-hi una aproximació intuïtiva aplicant una mena de zoom, una ampliació imaginària d’alguna neurona amb molta personalitat. Per exemple, podem imaginar una neurona motora que controla l’activitat motora voluntària dels músculs esquelètics en fer sinapsis amb les cèl·lules musculars. Considerem una motoneurona situada en la medul·la espinal lumbar que fa 70 micròmetres (7 x 10⁻⁵ o 0.000.070 metres) de diàmetre i que genera unes quantes prolongacions curtes al seu voltant més immediat, les dendrites. A sobre de les dendrites arriben les prolongacions d’altres neurones situades en molts llocs distants i que hi acudeixen per portar múltiples informacions relacionades amb el control de la mobilitat, formant prop de 105 sinapsis entre totes. La motoneurona té una sola prolongació llarga (anomenada axó) que conduirà el seu propi i únic senyal (el de la motoneurona) cap al múscul, al qual innervarà formant també sinapsis amb unes quantes desenes de cèl·lules musculars. Si imaginem una motoneurona lumbar que innerva un múscul flexor dels dits del peu, el seu axó ha d’arribar-hi (al llarg del nervi ciàtic i següents en aquest cas), i la distància que ha de recórrer entre la zona lumbar de l’esquena i el peu fa aproximadament un metre en moltes persones.
Ara ja podem fer l’experiment del zoom i engrandir amb la nostra imaginació la motoneurona com si fos una pilota de tenis fins que tingui un diàmetre reglamentari de 7 centímetres (0,07 metres). Aleshores mirem l’augment que hem aplicat mentalment, que resulta ser de 1.000 vegades:
0,07 m (7 cm) / 0.000.070 m (70 micròmetres) = 1.000
Així, la longitud de l’axó, que mesura realment un metre, ara fa 1.000 metres amb la simulació, un quilòmetre, i la conclusió immediata és que les neurones motores, si més no moltes d’elles, recorren aquesta gran distància malgrat que són tan petites, i fan, a l’escala microscòpica, el mateix que podria fer una pilota de tenis enviant senyals per un cable de l’electricitat a 1 km de distància. Pensem ara en aquest zoom aplicat a una motoneurona de la mateixa mida d’una balena blava de 25 metres, quin camí ha de recórrer! És clar que a l’interior de l’encèfal humà les distàncies són més curtes i no cal enviar senyals tan lluny, i, per tant, la velocitat de comunicació pot ser més ràpida (els senyals arriben abans a la diana).

Així, la comunicació neuronal a distància és possible gràcies a la diferenciació morfològica i histològica de les neurones. Al llarg de l’evolució, ha estat necessari establir també mecanismes que permetin i sostinguin aquesta extraordinària estructura de les neurones. En primer lloc, ha estat necessari per obtenir neurones funcionals que, durant l’evolució, es perfeccionessin mecanismes de guia i reconeixement: guia del recorregut inicial de les prolongacions neuronals i reconeixement de la destinació o de les cèl·lules diana.
Continuant amb el mateix exemple de la neurona motora lumbar, les neurones han de disposar de grans quantitats de la maquinària molecular per mantenir aquestes enormes prolongacions. El cos esfèric de la nostra motoneurona, sense comptar les dendrites, té un volum de 180 x 103 micròmetres cúbics (volum de l’esfera V = 4/3ᴨr3). El volum de l’axó cilíndric (sense comptar les ramificacions finals per innervar dintre del múscul els diferents miòcits) és de 78 x 106 micròmetres cúbics (volum del cilindre V = ᴨhr2; h és l’altura o longitud, i r, el radi de 5 micròmetres). Així doncs, el cos (soma) de la neurona ha de permetre el creixement, i mantenir i renovar l’estructura i les molècules d’un axó que té un volum 433 vegades més gran que ella mateixa (sense comptar les dendrites i l’arborització final de l’axó, com hem dit, que podria doblar aquest volum). Per assolir aquest repte, l’expressió genètica de les neurones és altíssima i continuada, amb una enorme quantitat dels elements de la maquinària de síntesi, de les cisternes i els ribosomes per produir molècules de tota mena.
Un altre mecanisme cel·lular en què les neurones s’han d’especialitzar molt és el transport intracel·lular de molècules i orgànuls des del soma cap al final de les llargues prolongacions (transport anterògrad) i des de les terminacions cap al soma (transport retrògrad, que inclou molècules senyalitzadores des de les cèl·lules innervades). El desplaçament el fan motors moleculars que gasten l’energia acumulada en l’ATP per canviar de conformació i "caminar" per sobre dels microtúbuls que formen part de l’esquelet cel·lular. Els motors de cinesina, situats en el soma, es fixen en la membrana de vesícules carregades de materials en el seu interior o ancorats en la membrana vesicular i es desplacen de forma anterògrada, centrífugament, a uns 300 micròmetres per segon. El motor de dineïna fa el recorregut contrari, retrògrad o centrípet, a 200 micròmetres per segon. Així doncs, de forma general i naturalment aproximada, entre una hora en sentit anterògrad i una hora i mitja en sentit retrògrad es pot dur a terme la comunicació dels extrems de la motoneurona, contribuint al manteniment d’aquesta estructura tan gran.
La importància de la velocitat de comunicació
Una vegada recorregudes les distàncies més llargues de la comunicació intercel·lular gràcies a la diferenciació morfològica de les neurones, la comunicació ha de ser ràpida, molt més que l’hora del transport axonal anterògrad de la nostra neurona motora, i més que els segons llargs del transport vascular d’hormones.
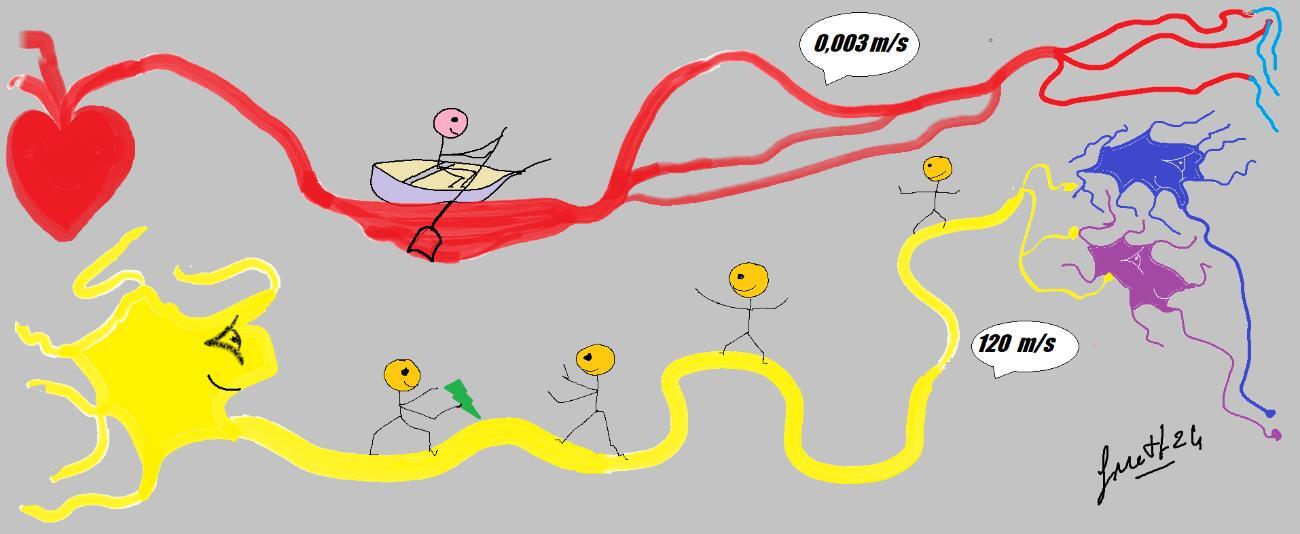
El mecanisme vascular de comunicació té una limitació important: la gran longitud dels vasos. En una persona s’acosta als 100.000 quilòmetres (105). També és una limitació la velocitat del flux sanguini, de 33 centímetres per segon en les artèries com l’aorta a 0,3 centímetres per segon en els capil·lars que fan la distribució final a les cèl·lules receptores dels mediadors. En la pràctica, una molècula senyalitzadora (la insulina alliberada des del pàncrees, posem per cas) pot tardar més d’un minut a acostar-se a moltes de les seves dianes. En molts casos, aquest «retard» no té un significat negatiu, si no hi ha pressa i no ve d’un parell de minuts.
Les neurones, però, utilitzen per senyalitzar una peculiar forma rapidíssima de generar corrents elèctrics suportats per canals d’ions. En la membrana de la prolongació axonal, un primer canal de sodi pot veure’s portat a augmentar la probabilitat d’obertura i deixar entrar sodi positiu dintre de l’axó si detecta activitat elèctrica important en la seva proximitat. L’entrada inicial de sodi actua sobre el següent canal, que és impel·lit a repetir el procés, i s’estableix una cadena que conclou en arribar a les terminacions axonals. Aquests senyals poden ser conduïts al llarg de l’axó a prop de 120 metres per segon (400 km/h) en el cas dels axons més gruixuts i més ben aïllats, com la nostra neurona motora i també les prolongacions de les neurones sensitives que porten informació perifèrica que s’ha de conduir ràpidament. La relació emmarcada a continuació ens diu que en 9 x 10⁻³ segons (9 mil·lisegons) un senyal emès per la motoneurona lumbar arriba al múscul flexor del peu que hem considerat i, naturalment, provoca la contracció del grup de cèl·lules musculars a les quals innerva (una neurona i les cèl·lules musculars que innerva és una unitat motora).
1 h (3.600 s) / 400 km (400.000 m) = 0.009 s
En un altre exemple, considerem una neurona petita de 20 micròmetres en algun nucli del cervell (un nucli és una col·lecció de neurones agrupades i relacionades funcionalment), que projecta un axó de 3 micròmetres de diàmetre a una distància d’un mil·límetre. Atès el petit diàmetre de l’axó, podria conduir a una velocitat d’uns 30 metres/segon. Així, el senyal podria tardar 33 microsegons a arribar a la diana i normalment menys d’un mil·lisegon.
Malgrat que les optimitzacions aconseguides per les neurones a fi de recórrer la distància i aconseguir velocitat són una gran troballa evolutiva, el mecanisme de secreció de les molècules senyalitzadores (neurotransmissors) per part de les neurones és el mateix que a tot arreu, el clàssic, l’exocitosi. Aquest mecanisme implica la fusió amb la membrana de la terminació nerviosa (membrana presinàptica), en les sinapsis, de vesícules carregades amb el neurotransmissor. El neurotransmissor ha de travessar la distància de pocs nanòmetres fins a interaccionar amb les molècules receptores de la membrana de la diana (postsinàptica). Un mecanisme de l'exocitosi com aquest en altres cèl·lules pot tardar alguns segons quan és estimulat, cosa que no té gaire transcendència si, posem per cas, se secreta moc protector en la superfície de l’estómac durant la digestió. En la comunicació neural ens movem en l’ordre de pocs mil·lisegons, com hem vist, i no és qüestió ara d’introduir un retardament de segons. Així que, en les terminacions nervioses, també com una millora evolutiva per augmentar l’eficàcia de la comunicació, s’ha diferenciat una maquinària molecular sofisticada que garanteix que sempre hi hagi vesícules preparades, associades directament amb la membrana presinàptica (en les anomenades zones actives), per obrir-se i secretar el neurotransmissor. En aquestes zones també se situen els canals de calci que, en deixar entrar aquest ió directament a prop de les vesícules quan arriba un senyal des del cos de la neurona, en promou l’alliberament immediat. El resultat és l’associació final de la vesícula amb les molècules anomenades Munc18, SNAP-25, sintaxina i complexina, que, treballant conjuntament com un ressort, estiren la vesícula per permetre la fusió de la seva membrana amb la de la cèl·lula, la formació d’un porus i la sortida del neurotransmissor.
L’eficàcia d’aquesta maquinària permet molta rapidesa en la neurotransmissió. Des del moment que arriba un senyal (potencial d’acció) a la terminació nerviosa presinàptica, s’obren els canals de calci, l’ió entra, s’activa el ressort de l’exocitosi, el neurotransmissor comença a travessar l’espai fins als receptors postsinàptics i s’inicia la seva activació, passen no gaire més de 50 microsegons. I per concloure tot el procés transcorre al voltant d’un mil·lisegon, que no introdueix pas cap retard significatiu en la senyalització.
En resum, la creixent complexitat evolutiva dels organismes pluricel·lulars i la necessitat de coordinació de les seves parts han afavorit la diferenciació de mecanismes de comunicació escaients a cada situació. El sistema vascular-endocrí i el sistema nerviós poden superar grans distàncies entre les parts del cos per comunicar-les. En particular, les neurones han diferenciat llargues prolongacions que les acosten, amb gran precisió, fins al contacte físic en les sinapsis, a les cèl·lules diana. Aquestes prolongacions també senyalitzen a gran velocitat, utilitzant corrents elèctrics gràcies a l’activació seqüencial dels canals de sodi (els canals sensibles a modificacions del potencial de la membrana plasmàtica), que són la gran troballa evolutiva que permet les elevades velocitats en la comunicació intercel·lular tan característiques de les neurones. L’elevada eficàcia de la nanomàquina de secreció de neurotransmissors en les sinapsis permet també iniciar comunicacions en microsegons.
Sembla raonable concloure que les neurones tenen com a primera finalitat biològica en l’evolució comunicar a distància senyals de forma ràpida en els complexos i grans organismes multicel·lulars que necessiten coordinar les seves parts de forma estable.
Pensant en un cervell humà amb 1011 neurones i entre 1014-1015 sinapsis funcionant quasi permanentment amb els paràmetres més eficients de distància, velocitat, precisió i plasticitat, i construint múltiples xarxes i engrames, podrem seguir reflexionant sobre aquestes qüestions.
NOTA
Text adaptat del capítol "Comunicació neuronal" del llibre Per què les neurones? La raó de ser biològica de les neurones i del sistema nerviós. (Autor: Tomàs Ferré, Josep Maria. Barcelona: Publicacions i Edicions de la Universitat de Barcelona, 2024. ISBN 978-84-1050-049-5). Modificat de la Secció I del web https://josepmariatomas.cat/