
La raó de ser de les neurones. Precisió i plasticitat
-

-

- 1 of 2

La construcció i manteniment de la complexitat dels organismes necessita mecanismes de coordinació dels components basats en xarxes de comunicació vascular (105 km de tubs) i neural (amb milions de cables generadors i conductors d’electricitat). Ambdues xarxes poden superar grans distàncies, així i tot, les prolongacions neuronals senyalitzen a gran velocitat. Aquesta propietat pot ser un bon argument teleològic per concloure que les neurones tenen, com a primera finalitat biològica en l’evolució, comunicar a distància senyals de forma ràpida en els cada vegada més complexos organismes multicel·lulars que necessiten coordinar les seves parts de forma estable.
La comunicació neuronal posseeix dos valors afegits, la precisió i l’adaptabilitat o plasticitat. Distància, velocitat, precisió i plasticitat confereixen a les neurones l’extraordinària capacitat que mostren en associar-se per a construir engrames i conjunts d’engrames de memòria i pensament.
La importància de la precisió en la comunicació neuronal
Des del punt de vista de la comunicació intercel·lular, quina pot ser la màxima precisió possible? Una resposta intuïtiva pot ser que una cèl·lula enviï un senyal a una altra cèl·lula, i tan sols a una. El contacte directe de dues cèl·lules lliures com els leucòcits ofereix aquesta possibilitat. La senyalització de tu a tu entre un fagòcit que està destruint bacteris i un limfòcit T posseïdor d’una molècula de receptor TCR (T Cell Receptor) capaç de reconèixer algun tros dels pèptids bacterians que presenta el fagòcit, ha de permetre l’optimització de les dues cèl·lules i una resposta defensiva incrementada i eficaç. És així com funciona el sistema immunitari, però les seves cèl·lules, els leucòcits, s’han de trobar per interaccionar face-to-face. Això pot tardar hores mentre circulen entre la sang, la limfa i el teixit connectiu, i travessen els ganglis limfàtics (filtres en la circulació limfàtica) i la melsa (filtre en la circulació sanguínia).
Les prolongacions neuronals permeten una gran aproximació a les cèl·lules diana en les sinapsis (quasi com el contacte físic), i, per tant, una sola neurona pot donar, en els circuits que és necessari, un missatge a una altra neurona o cèl·lula muscular o epitelial única. Per tal que el sistema endocrí pogués fer aquesta funció tan específica, hauria d’haver-hi una cèl·lula que produís una hormona o mediador únic, i que aquest mediador únic, després de circular, trobés una cèl·lula diana amb un receptor de membrana també únic per reconèixer-lo. Això és impossible (bilions de cèl·lules i milers de gens no permeten tanta diversitat organitzada, tot i que tampoc no és necessària). El sistema nerviós, en recórrer llargues distàncies a gran velocitat, pot aportar aquesta precisió quan sigui convenient o necessari per a una bona comunicació que afavoreixi la coordinació dels organismes.
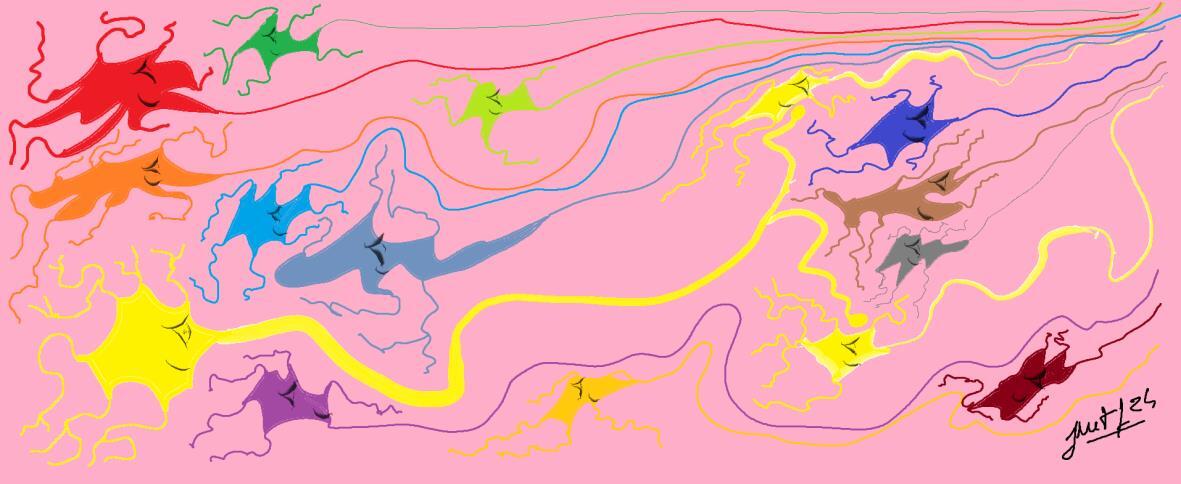
El dibuix inclòs il·lustra una neurona (color groc) fent sinapsis amb neurones seleccionades específicament (també de color groc) entre altres.
Les motoneurones són un bon referent per visualitzar la precisió neural. Una sola motoneurona, situada en qualsevol nivell de la medul·la espinal, envia el seu axó al llarg d’un nervi fins a arribar a un múscul, i, en ramificar-se, cada branca col·lateral final innerva una cèl·lula muscular individual. El nombre de cèl·lules musculars (n) innervades per una sola neurona motora és una ’Unitat motora’ (1/n). Un múscul molt gran que, en contraure’s, no realitza moviments gaire fins, com els glutis en les natges, té unitats d’1/2000 o més cèl·lules. Solament que es doni l’activació d’una unitat com aquestes tindrà lloc una forta contracció. 2000 cèl·lules musculars contraient-se a la vegada, tot i ser el mínim de contracció d’aquest múscul, provoquen una sacsejada. Per a la funció que fan els glutis, tanmateix, això no importa gaire. En l’extrem contrari, observem els músculs que promouen moviments molt fins com els lumbricals, que mouen els dits de la mà, o els extraoculars, que desplacen els ulls quan mirem al nostre voltant. Pensem en un neurocirurgià empalmant i cosint un petit vas o un petit nervi (els nervis perifèrics es poden regenerar) seccionat. Pensem també en la finor de petits moviments, l’un darrere l’altre, que ha de fer un ull per seguir el vol d’un insecte o per anar resseguint una paraula darrere l’altra en un escrit, com aquest. En tots aquests músculs, les motoneurones innerven generalment entre 1 i 5 cèl·lules musculars. L’activació d’una sola motoneurona causa una contracció del múscul innervat que produeix moviments de fracció de mil·límetre i, per tant, de molta finor.
Així doncs, les neurones donen distància, velocitat i un alt nivell de precisió quan és necessari. Quant a la velocitat i precisió, el sistema endocrí-vascular queda enrere. Això no desmereix el gran valor comunicatiu i integrador del sistema endocrí, més que suficient en la majoria dels casos. De fet, tots dos sistemes, l’endocrí i el neural, actuen permanentment, tots dos de forma coordinada, per exemple en la regulació de la pressió de la sang. Un sensor neural en la paret de l’artèria caròtida posa en acció el sistema nerviós autònom, les neurones del qual, innervant difusament les cèl·lules musculars de la paret de moltes artèries grans i petites (arterioles), en promouen de forma sistèmica (en alliberar el neurotransmissor noradrenalina) la contracció (per augmentar la pressió dintre d’aquests vasos) o bé, si cal, la relaxació (alliberant acetilcolina en alguns vasos) per disminuir la pressió. Paral·lelament, un altre sensor no neural, en aquest cas en la paret d’artèries petites dintre dels ronyons, posa en acció la producció d’una hormona (angiotensina) que, circulant des dels ronyons pertot arreu, col·labora en la regulació de la pressió de la sang incrementant-la quan és necessari.
La importància de la plasticitat
Les neurones entren en contacte i es comuniquen en les sinapsis. La transmissió química en les sinapsis no es comporta com un interruptor que passa informació entre les dues cèl·lules o no la passa. En general, les sinapsis aprenen a funcionar millor com més funcionen. Poden augmentar la seguretat, la garantia de funcionar correctament, quan funcionen molt o bé molt seguit, o, contràriament, treballen poc. Poden tenir en compte la previsió de possibles fallides o d’esgotament i també la possibilitat d’adaptar-se per funcionar més intensament, i moltes d’elles tenen la capacitat de guardar memòria de curta o llarga durada. Per aquesta raó es diu que les sinapsis són estructures plàstiques que poden adaptar-se a l’ús que se’n fa, que aprenen, en definitiva. Fins i tot poden competir entre elles amb la potenciació de les més actives i eliminació o silenciament de les que ho són menys.
Hi ha diversos mecanismes d’adaptació plàstica que impliquen canvis estructurals (normalment de llarga durada) i canvis funcionals de curta i llarga durada. En les sinapsis entre dues neurones poden coexistir canvis presinàptics i postsinàptics, estructurals i funcionals, de curta i llarga durada, originats per un o per diferents mecanismes. Tots ells tenen en comú, però, el fet que són l’adaptació a les variacions d’activitat (o d’utilització), amb la finalitat de garantir la seguretat de la comunicació i la millora dels circuits més emprats, els que tenen més probabilitat de ser usats, que, així, poden emmagatzemar memòria.
Els mecanismes més rellevants de plasticitat són l’eliminació i el silenciament sinàptic, la regulació autocrina i paracrina, la facilitació, la depressió i la potenciació de curta durada, i també la potenciació i la depressió de llarga durada.
Exemples d’algun d’aquests mecanismes els podem trobar, una vegada més, en la motoneurona i la sinapsi neuromuscular formada en les cèl·lules musculars estriades esquelètiques voluntàries.
Com hem dit un mecanisme rellevant d’adaptació és l’eliminació de sinapsis, que té lloc, en tot el sistema nerviós, durant la formació de les xarxes neuronals, i en el sistema nerviós perifèric també durant la regeneració. Al llarg del desenvolupament hi ha una sobreproducció de neurones i de relacions sinàptiques entre elles que facilita l’establiment d’una multiplicitat de connexions, que sabem que és un valor positiu en l’adquisició de complexitat en aquest teixit. Durant el funcionament inicial, moltes neurones desapareixen, mentre que les múltiples connexions competeixen mútuament fins a la consolidació de les més actives o més escaients i l’eliminació de les supernumeràries. Les cèl·lules que funcionen juntes es connecten juntes. Amb aquest mecanisme les xarxes guanyen especificitat. Una altra forma de dir-ho en el model neuromuscular és que cada unitat motora és independent de les veïnes i amb funció específica.
Un altre mecanisme plàstic és la regulació extracel·lular autocrina. En les sinapsis neuromusculars posem per cas, es localitzen receptors metabotròpics del neurotransmissor principal (receptors colinèrgics muscarínics en aquest cas, M1 i M2) i receptors de cotransmissors, com els purinèrgics sensibles a l’adenosina (A1 i A2). L’acetilcolina i l’adenosina alliberades en la neurotransmissió actuen de forma autocrina modulant l’activitat de la mateixa terminació nerviosa. Aquests receptors solen coexistir en la terminació nerviosa, i n’hi ha diferents subtipus acoblats a mecanismes intracel·lulars diferents i, per tant, amb efectes sobre la neurotransmissió diferents, generalment els uns positius i els altres negatius, uns estimuladors i altres inhibidors.
També la regulació paracrina retrògrada és un mecanisme sinàptic fonamental. En moltes sinapsis, la cèl·lula postsinàptica respon a l’activació amb la secreció de factors que afecten de forma retrògrada la terminació nerviosa presinàptica a través de receptors que modulen la seva actuació immediata o fins i tot, després d’un transport axoplasmàtic retrògrad, modifiquen l’expressió genètica de la neurona presinàptica per afavorir la producció de canals iònics, neurotransmissors i receptors. Moltes d’aquestes molècules reguladores són anomenades neurotrofines.
Altres mecanismes de plasticitat funcional de curta durada estan basats en la persistència de l’ió calci (ió que és el desencadenant de la secreció de transmissor) en l’interior de les terminacions nervioses després d’una o d’algunes activacions sinàptiques consecutives (i abans que l’ió sigui extret o segrestat). Els principals mecanismes són: facilitació, depressió i potenciació posttetànica (postactivació). Es tracta de mecanismes d’origen presinàptic.
La facilitació sinàptica es produeix quan arriben dos o més senyals (potencials d’acció) seguits a una terminació nerviosa. El resultat és un increment progressiu (fins a cert punt) de la quantitat de neurotransmissor alliberat amb cada estímul consecutiu. La rapidíssima entrada de calci amb cada potencial d’acció (menys d’un mil·lisegon) no va acompanyada de semblant rapidesa en l’extracció (que necessita una bomba i també un intercanviador amb altres ions), i d’això en resulta certa acumulació transitòria que facilita la secreció de neurotransmissor.
Si l’arribada a la terminació nerviosa de potencials d’acció és d’elevada freqüència, sol aparèixer, amb un petit decalatge, una potenciació postactivació més intensa que la facilitació i que pot prolongar-se alguns minuts després de l’activació. En aquest cas, l’elevació intracel·lular presinàptica de calci que té més durada permet l’activació addicional d’alguna cascada intracel·lular enzimàtica i la fosforilació més prolongada de les molècules de l’exocitosi, amb el resultat de la potenciació de l’alliberament de neurotransmissor. Això no obstant, si es dona una elevada freqüència i una duradora persistència en l’arribada de potencials d’acció a certes terminacions nervioses, es pot produir una depressió en lloc d’una potenciació. El fenomen implica una depleció o buidatge transitori de vesícules sinàptiques dels punts de secreció, de les zones actives i, per tant, una disminució de la secreció vesicular de neurotransmissor fins a l’eventual recuperació.
Així com els mecanismes que acabem de descriure tenen un origen essencialment presinàptic (modulació de l’alliberament de neurotransmissor), hi ha dues formes importants de potenciació i depressió de molt llarga durada que s’originen en el component postsinàptic, també amb repercussió presinàptica però. Hi ha diversos tipus de sinapsis glutamatèrgiques que funcionen amb glutamat com a neurotransmissor. Aquestes sinapsis representen el 90 % de totes les excitadores en el sistema nerviós central, i un dels tipus sembla ben adaptat per ser el suport de canvis moleculars de molt llarga durada.
En la membrana postsinàptica d’aquestes sinapsis (vegeu la figura adjunta) hi ha almenys dos tipus de receptors, els no-NMDA (també anomenats receptors AMPA) i els NMDA (nom derivat de la molècula N-methyl-D-aspàrtic àcid, que és un agonista farmacològic rellevant). En el receptor no-NMDA, el glutamat indueix l’increment de la permeabilitat al sodi, que, en entrar, despolaritza la membrana postsinàptica. Els receptors NMDA situats en la mateixa membrana postsinàptica són permeables al sodi i al calci.
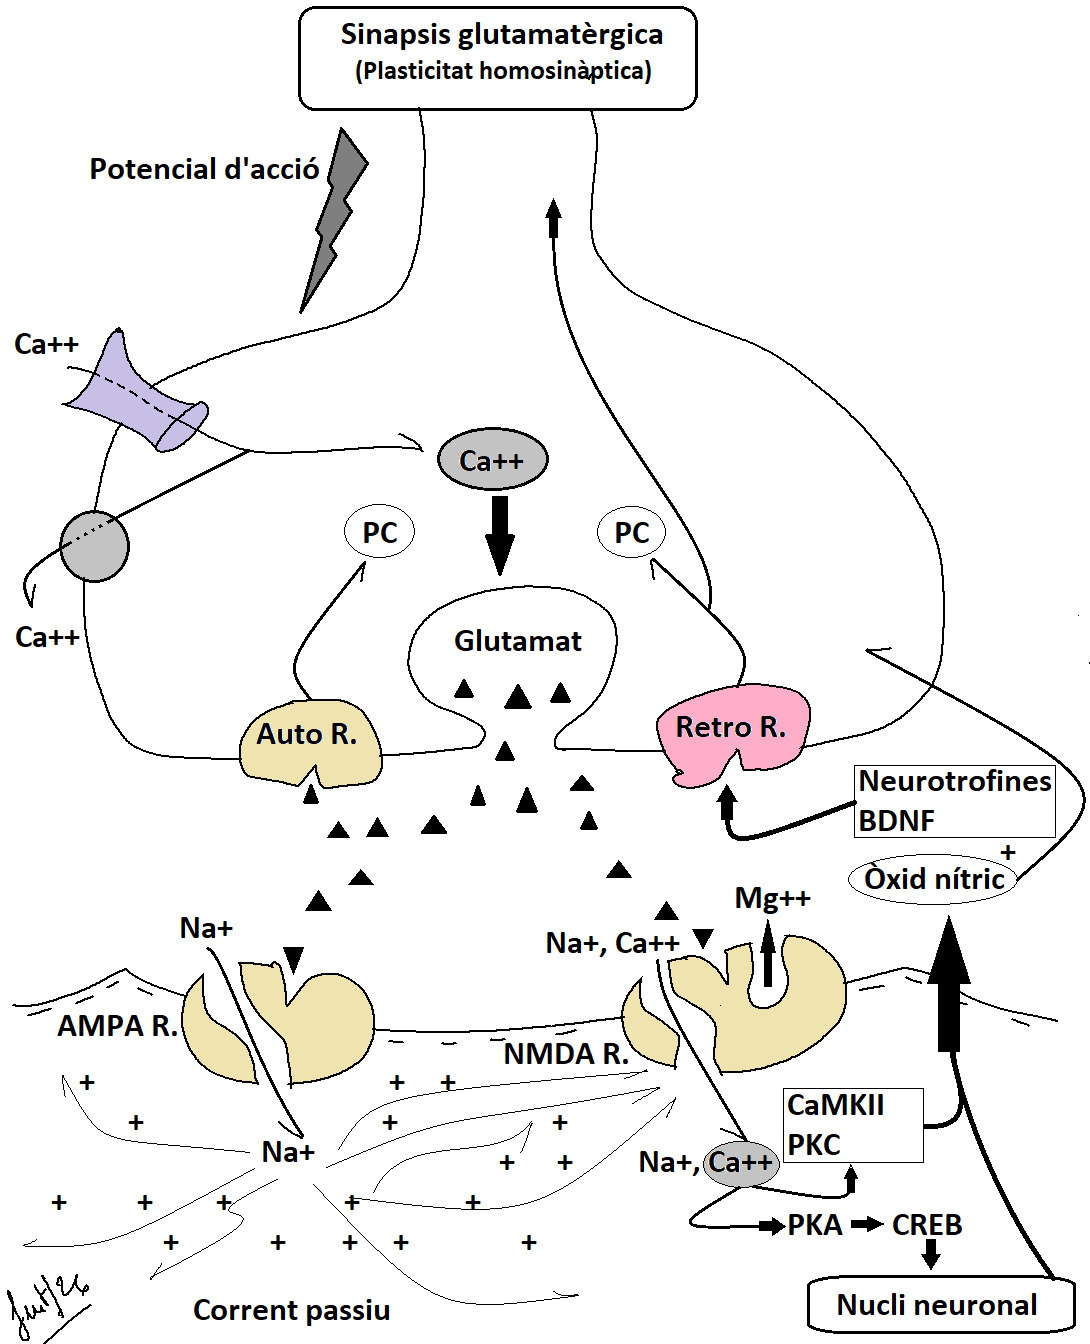
Modificar, però, la seva probabilitat d’obertura és més complex perquè aquest tipus de receptor té, en repòs, el canal bloquejat per ions magnesi. Aquest ió solament es mou cap a l’exterior, deixant pas a l’entrada de sodi, i sobretot calci, quan el receptor NMDA, que és també sensible al voltatge (és un curiós receptor mixt, dependent a la vegada de voltatge i també del neurotransmissor o lligant extern glutamat), detecta una elevada i llarga despolarització veïna. Aquesta despolarització ha de ser produïda prèviament per l’obertura d’alguns receptors no-NMDA (o altres receptors no glutamatèrgics en sinapsis excitadores veïnes). Per tant, l’activació dels receptors NMDA és secundària a l’actuació prèvia immediata d’altres sinapsis excitadores, i permet, en conseqüència, una associació entre la primera i la segona despolarització o activació. Finalment, el Ca2+ que entra en la cèl·lula postsinàptica pel receptor-canal NMDA desencadena canvis importants de llarga durada en la cèl·lula postsinàptica amb l’activació de proteïna-cinases dependents de calci. El resultat comporta fosforilacions i activació d’enzims i factors de transcripció amb modulació de l’expressió genètica i l’establiment i millora d’una més gran eficàcia de molt llarga durada en la transmissió sinàptica. La depressió de llarga durada que representa un esgotament sinàptic, es pot produir després d’una molt intensa activitat de les sinapsis, i es basa en l’activació de fosfatases en aquest cas, i una disminució de la densitat dels receptors postsinàptics no-NMDA. Aquest mecanisme de depressió pot tenir un paper rellevant en l’eliminació de les traces de memòria funcional del circuit implicat.
L’encèfal humà (amb la medul·la espinal i ganglis) està equipat amb 1011 neurones i entre 1014 i 1015 sinapsis funcionant quasi permanentment amb els paràmetres més eficients descrits de distància, velocitat, precisió i plasticitat que coneixem força bé. L’encèfal està construït per múltiples xarxes d’aquestes neurones relacionades en engrames i grups d’engrames que comencem a conèixer. Del funcionament conjunt d’aquests elements sorgeix el pensament. Com però?
Nota: Text adaptat del capítol ‘Comunicació neuronal’ del llibre Per què les neurones? (TOMÀS FERRÉ, Josep Maria. Per què les neurones? La raó de ser biològica de les neurones i del sistema nerviós. Barcelona: Publicacions i Edicions de la Universitat de Barcelona, 2024. ISBN 978-84-1050-049-5.). Modificat de la Secció I de la web https://josepmariatomas.cat/